В нескольких опубликованных мною статьях рассматривается вопрос об использовании ДНК в качестве источника энергии. Но это не просто предложение: оно основано на числе 134 в молекуле ДНК.
В интернете можно найти сведения о более ранних экспериментах по использованию ДНК для получения энергии, однако, насколько известно, добиться желаемого результата не удалось.
Возможно, стоит вернуться к этому вопросу? Может быть, причина в том, что тогда ещё не было известно о числе 134? Теперь, когда мы обратили на это внимание, не пора ли заново рассмотреть возможности ДНК с этой точки зрения?
А вдруг именно здесь скрывается направление, которое ещё предстоит исследовать?
Когда мы говорим о молекуле, давшей начало жизни на Земле, сразу хочется ответить: конечно, это ДНК! Но на самом деле всё не так однозначно.
Ведь прежде чем появилась ДНК, должны были возникнуть её составляющие, и главными из них являются азотистые основания. Именно они играют важнейшую роль в хранении и передаче генетической информации.
Но как появились эти молекулы? На этот счёт существует немало гипотез.
В одной из своих статей я предлагаю возможный вариант происхождения азотистых оснований на ранней Земле. Возможно, именно здесь скрывается один из ключей к пониманию того, как неживая материя сделала первый шаг к жизни.
Сегодня всё чаще говорят о том, что развитие искусственного интеллекта потребует огромного количества энергии. Одновременно растёт интерес к альтернативным источникам энергии и новым технологиям.
А что, если один из неожиданных вариантов скрывается в самой природе — в молекуле ДНК?
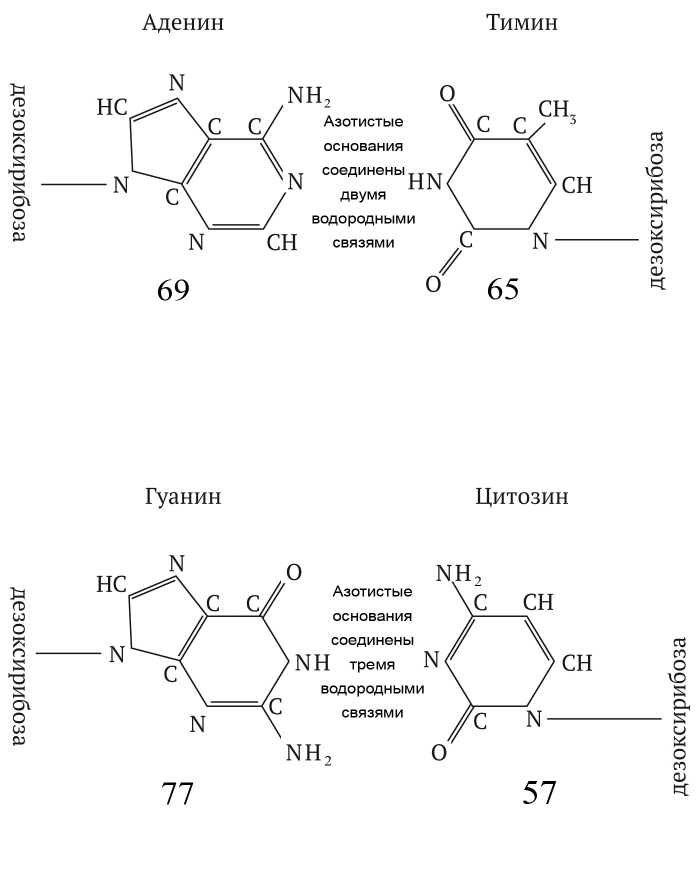
Обычно ДНК воспринимают прежде всего как носитель наследственной информации. Но её структура гораздо сложнее. В частности, комплементарные основания ДНК имеют интересную особенность: в парах аденин–тимин и гуанин–цитозин суммарное количество электронов составляет 134 электрона.
При определённых процессах, связанных с изменением и последующим восстановлением структуры ДНК, возможно высвобождение энергии.
Пока это именно гипотеза, а не готовая технология. Но природа иногда подсказывает неожиданные решения.
Если ДНК действительно способна участвовать в процессах накопления или высвобождения энергии, возможно, когда-нибудь мы научимся использовать это свойство практически.
А что, если один из будущих источников энергии окажется намного ближе, чем мы думаем, — внутри самой живой клетки?
Одним из наиболее грозных заболеваний являются злокачественные новообразования.
Поэтому настала пора выяснить, в чём же причина появления этих опухолей. Почему клетки из нормально функционирующих внезапно превращаются в клетки, которые, как сумасшедшие, начинают усиленно размножаться и в конечном итоге образуют опухоли?
Говорят, что, зная причину того или иного действия, мы на 50 % уже на пути к победе.
Группа исследователей под руководством И Чин Ванна из Национального университета Чэн Кун представила первые доказательства молекулярного механизма, с помощью которого табачный канцероген, называемый никотинпроизводным нитрозаминкетоном, стимулирует выработку фермента ДНК-метилтрансферазы 1 в клетках.
Это происходит в результате того, что никотинпроизводный нитрозаминкетон активирует несколько типов белков, которые подавляют деградацию ДНК-метилтрансферазы 1, в результате чего происходит накопление этого фермента в клетках. При метилировании за счёт фермента метилтрансферазы происходит присоединение метильной группы к цитозину в молекуле ДНК.
Метилтрансфераза в больших количествах встречается в раковых клетках у курильщиков.
Исследователи полагают, что аналогичный механизм может иметь место и при других заболеваниях, связанных с курением, а также в ряде других случаев рака.
Метилтрансфераза…
Получается, что активация этого фермента и есть причина возникновения рака?
Важный вклад в изучение механизмов деметилирования ДНК внесли исследования группы учёных во главе с профессором И Чжаном (Yi Zhang). В частности, были исследованы промежуточные продукты, участвующие в процессе деметилирования.
При деметилировании всей ДНК после конечного перехода к цитозину молекула резко раскручивается.
Первым этапом этого процесса является метилирование цитозина, при котором образуется 5-метилцитозин. И главное: этот процесс катализируется ферментом метилтрансферазой!
Этот белок отвечает за пуск процесса деметилирования. Можно предположить, что при гиперактивации этого фермента произойдёт его накопление в клетке, что заставит ДНК постоянно удваиваться.
В итоге это приведёт к безудержному размножению клеток с последующим образованием опухоли.
Для своих исследований мне нужно было узнать длину одного нуклеотида молекулы РНК. Искала эту информацию в интернете, но таких данных не нашла.
Оказалось, что эта информация пока неизвестна, поэтому пришлось провести вычисления, чтобы найти этот параметр РНК.
Известно, что РНК может принимать только А-форму спирали ДНК из-за гидроксильной группы у рибозы.
А-форма ДНК необходима в тех процессах, где образуются ДНК–РНК-комплексы, так как РНК заставляет цепь ДНК принимать А-форму. Таким образом, для вычислений были использованы параметры А-ДНК.
Но в разных источниках были неодинаковые данные.
Результаты для вычислений были взяты на сайте «Академик»: «А-ДНК — это… Что такое А-ДНК?» Сайт Genetics_dictionary.Academic.ru. Поисковик: Яндекс.
Вычисления:
Параметры А-ДНК таковы: на один виток приходится 11 пар нуклеотидов, шаг спирали или расстояние между витками составляет 2,56 ангстрема, диаметр спирали — 23 ангстрема.
Как известно, при делении клетки сначала происходит раскручивание ДНК, а затем — удвоение этой молекулы и последующие процессы. Но нас интересует именно процесс раскручивания, поскольку это один из начальных этапов деления клетки. При таком грозном заболевании, как рак, вначале также происходит раскручивание ДНК.
Поняв этот механизм, мы, возможно, окажемся на шаг ближе к разгадке того, как возникают опухоли.
Итак, как происходит раскручивание ДНК?
При метилировании цитозина к нему добавляется метильная группа (—CH₃), источником которой является S-аденозилметионин. Этот процесс катализируется ферментами — ДНК-метилтрансферазами. В результате добавления метильной группы изменяется электронная структура молекулы. Согласно предлагаемой модели, это может влиять на взаимодействие участков ДНК и способствовать её более сильному скручиванию под действием электростатических сил (F).
При последующих этапах деметилирования происходят следующие превращения:
Важный вклад в изучение механизмов деметилирования ДНК внесли исследования группы учёных во главе с профессором И Чжаном (Yi Zhang). В частности, были исследованы промежуточные продукты, участвующие в процессе деметилирования.
При деметилировании всей ДНК после конечного перехода к цитозину молекула резко раскручивается, при этом образуется энергия, необходимая для репликации и других биохимических процессов. Это можно сравнить с сильно скрученной веревкой: если отпустить один конец, она раскручивается.
Оказывается, есть и такое в ДНК. Так что же это за закономерность?
Для этого нужно внимательно посмотреть на структуру ДНК и понять, почему она так ровно закручена вокруг своей оси.
Всё оказывается просто. Для этого надо подсчитать количество электронов в каждой комплементарной паре, которые, как нам известно, состоят из двух азотистых оснований. Причём аденин соединён с тимином двумя водородными связями, а гуанин соединён с цитозином тремя водородными связями.
У тимина (C₅H₆N₂O₂ — 66) суммарное количество электронов в ДНК — 65, у комплементарного основания аденина (C₅H₅N₅ — 70) — 69, у цитозина (C₄H₅N₃O — 58) в молекуле — 57, у гуанина (C₅H₅N₅O — 78) в ДНК — 77.
Комплементарные пары:
Аденин + тимин = 69 + 65 = 134
Гуанин + цитозин = 77 + 57 = 134
Таким образом, комплементарность азотистых оснований в ДНК, в том числе, определяется суммарным количеством электронов в парах. Это число — 134.
Великий Пифагор говорил: «Числа правят миром». И в этом случае он оказался как никогда прав!
Группа исследователей впервые смоделировала полный жизненный цикл живой бактериальной клетки с наномасштабным разрешением, отследив поведение каждого гена, белка и химической реакции от репликации ДНК до клеточного деления. Результаты исследования, опубликованные в журнале Cell, открывают возможность заменить сотни реальных лабораторных экспериментов одной комплексной 4D-симуляцией.
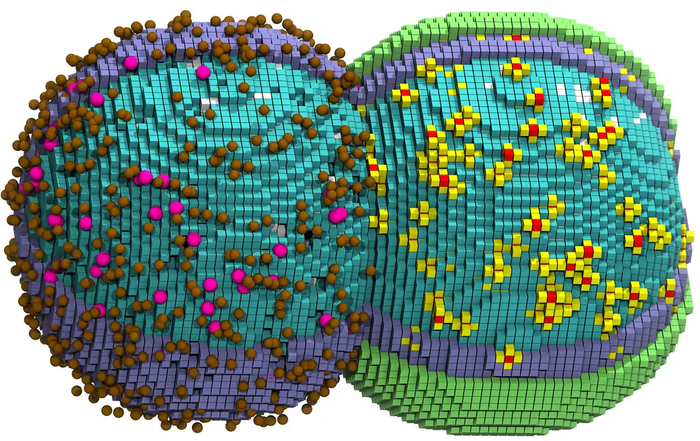
Смоделированная клетка на ранних стадиях деления
Смоделированная клетка на ранних стадиях деления. В левой половине показана цитоплазма, механизмы деградации мРНК и переносчики сахара. В правой половине добавлены мембрана и рибосомы. Авторы: Zane Thornburg. Источник: Cell.
На иллюстрации представлена трехмерная компьютерная модель бактериальной клетки в разрезе. Клетка имеет вытянутую форму, готовясь к делению. Левая часть демонстрирует плотное скопление синих кубических структур (цитоплазма) с вкраплениями розовых и коричневых элементов у внешней границы. Правая часть показывает полупрозрачную зеленую оболочку (мембрану), под которой скрывается густая сеть красных нитей (ДНК) с множеством мелких желтых сфер (рибосомы). Авторы: Zane Thornburg. Источник: Cell.
Шесть дней ради 105 минут жизни
Ученые представили первую полномасштабную 4D-модель (три пространственных измерения плюс время) минимальной бактериальной клетки. Модель с наномасштабным разрешением учитывает пространственное положение и химические реакции каждого гена, белка и метаболита на протяжении всего клеточного цикла.
Объектом оцифровки стала синтетическая бактерия JCVI-syn3A. Этот организм обладает искусственно сокращенным геномом содержащим всего 493 гена на одной кольцевой хромосоме, минимум, необходимый для роста и поддержания жизни, что делает его идеальным кандидатом для компьютерного моделирования.
Несмотря на генетическую простоту бактерии, вычислительные затраты на симуляцию оказались колоссальными. Для обработки одного жизненного цикла, который в реальности занимает около 105 минут, потребовалось шесть дней непрерывных расчетов на суперкомпьютере Delta. Масштабный проект, потребовавший интеграции огромных массивов экспериментальных данных от протеомики до криоэлектронной томографии, разрабатывался исследователями из Университета Иллинойса, Гарварда и Института Дж. Крейга Вентера в течение нескольких лет.
Синтетический полигон: что скрывается внутри бактерии Syn3A
Бактерия JCVI-syn3A, ставшая прототипом для цифрового двойника, не встречается в природе. Это искусственно созданный в лабораториях Института Дж. Крейга Вентера организм, генетически урезанная версия бактерии Mycoplasma mycoides. Предыдущая версия этого синтетического микроба, известная как Syn3.0, имела еще меньше генов, но из-за этого потеряла способность делиться на ровные, правильные сферы. Чтобы вернуть клетке стабильную морфологию при делении, ученым пришлось вернуть часть генетического кода.
В итоге геном версии Syn3A содержит всего 493 гена, расположенных на одной кольцевой хромосоме (для сравнения, у кишечной палочки их более четырех тысяч). Как и у других бактерий, у нее нет ядра. Каждый компонент этой системы либо является частью внешней мембраны, либо транспортируется снаружи, либо собирается прямо в цитоплазме.
Создавая 4D-анимации на основе полученной модели, исследователи столкнулись с неожиданной проблемой: внутренняя среда Syn3A оказалась настолько плотно набита молекулярными игроками, что разглядеть хоть что-то было невозможно. Чтобы визуализировать, как единственная хромосома протискивается сквозь тесную цитоплазму клетки, ученым пришлось сделать часть белков прозрачными. Именно эта невероятная пространственная теснота и делает обычные математические расчеты неточными: в живой клетке молекулам нужно буквально проталкиваться друг к другу, чтобы вступить в химическую реакцию.
Франкенштейн из алгоритмов: как оживить синтетическую бактерию
Чтобы реалистично сымитировать эту тесноту, команде пришлось гибридизировать сразу несколько независимых вычислительных подходов в один программный комплекс. Метаболизм, где молекулы малы, а их концентрации высоки, описывается классическими обыкновенными дифференциальными уравнениями. Процессы транскрипции генов моделируются через химическое основное уравнение, учитывающее случайность реакций. За физическое перемещение молекул в пространстве отвечает реакционно-диффузное основное уравнение, которое разбивает объем клетки на кубическую сетку с шагом в 10 нанометров.
Самым сложным элементом стала динамика главной молекулы — хромосомы. Ее физическое поведение моделировалось методом броуновской динамики в симуляторе LAMMPS.
В процессе разработки аспирант Эндрю Мэйтин обнаружил критическое «бутылочное горлышко»: расчет репликации и движения запутанной нити ДНК замедлял всю симуляцию настолько, что время расчета жизненного цикла удваивалось и практически останавливалось.
Чтобы физика макромолекул не тормозила химию метаболизма, вычисления разделили на аппаратном уровне. Один графический процессор был выделен исключительно под тяжелую симуляцию динамики ДНК, в то время как второй GPU обрабатывал все остальные клеточные процессы, обмениваясь данными с первым каждые четыре секунды биологического времени. Суммарно на симуляцию 50 уникальных жизненных циклов ушло около 15 000 GPU-часов работы ускорителей NVIDIA A100.
Искусственная сила и пределы современной биологии
Точность симуляции превзошла ожидания авторов. При многократных запусках с незначительно меняющимися стартовыми условиями виртуальная клетка удваивала свой размер и делилась в среднем за время, отличающееся от реальных 105 минут не более чем на две минуты. Время репликации самой хромосомы составило около 51 минуты.
Модель точно предсказала динамику копирования генома — соотношение между стартовыми и конечными участками репликации хромосомы совпало с реальным. В симуляции этот показатель составил 1.28, что плотно коррелирует с результатами физического секвенирования ДНК живых клеток 1.21. Это подтверждает, что виртуальная бактерия копирует свой генетический материал с той же скоростью и частотой, что и настоящая.
Однако наиболее интересными результатами стали расхождения и физические ограничения симуляции. Постдок Зейн Торнбург отметил, что заставить мембрану и растущую ДНК корректно взаимодействовать при одновременном движении было крайне тяжело. Когда клетка начинала делиться на две дочерние, физического моделирования работы белков-конденсинов и топоизомераз оказалось недостаточно, чтобы распутать две новые хромосомы. Модель не могла самостоятельно развести их по разным половинам клетки за адекватное время машинных расчетов.
Чтобы деление завершилось, ученым пришлось внедрить в код «физический костыль» — искусственную силу отталкивания величиной примерно 12 пиконьютонов, которая принудительно растаскивала дочерние хромосомы. Это наглядно демонстрирует, что наука до сих пор не до конца понимает биомеханические механизмы сегрегации хромосом у организмов, лишенных стандартных белковых систем распределения ДНК.
Кроме того, симуляция выявила легкий дефицит в производстве крупных белков. Анализ показал причину: в текущей модели каждая матричная РНК может считываться только одной рибосомой за раз. В живой природе на длинных мРНК формируются полисомы — цепочки из нескольких рибосом, одновременно синтезирующих белок. Интеграция диффузии массивных полисом в виртуальную клетку пока оказалась слишком вычислительно дорогой задачей.
Хаос как норма: почему каждая клетка уникальна
Запустив модель 50 раз, биологи получили 50 совершенно разных жизненных историй. Благодаря тому, что модель учитывает пространственную диффузию, распределение макромолекул (например, рибосом или белков) по двум новым дочерним клеткам при делении оказалось абсолютно случайным, подчиняясь биномиальному распределению. Ни одна дочерняя клетка не получала идеальную половину ресурсов.
Еще более удивительным оказалось поведение генов. Поскольку запуск транскрипции зависит от того, столкнется ли РНК-полимераза с нужным участком ДНК в пространстве, процесс носит случайный, «взрывной» характер. Анализ показал, что 81 ген (из 493 существующих) вообще ни разу не был считан полимеразой на протяжении одного-трех виртуальных клеточных циклов. Иными словами, клетка может прожить всю жизнь, ни разу не обратившись к части своей ДНК. При этом виртуальный организм выживал за счет белков, унаследованных от предыдущего поколения.
Тестирование гипотез без пробирок
Возможность наблюдать за живой системой в таком разрешении меняет подход к клеточной биологии. По словам Зан Латей-Шультен, цельноклеточная модель прогнозирует множество параметров одновременно. Исследователь может локально изменить параметры нуклеотидного метаболизма и мгновенно увидеть, как это повлияет на скорость репликации ДНК на другом конце клетки и сборку рибосом в центре цитоплазмы.
Сейчас в науке набирает популярность использование искусственного интеллекта для прогнозирования состояния клеток. ИИ способен генерировать моментальные «снимки» клеточных процессов на основе огромных массивов данных. Команда из Иллинойса предлагает фундаментально иной путь — их 4D-модель не угадывает следующее состояние, а математически рассчитывает его, опираясь на строгие законы биофизики. В перспективе это позволит превратить суперкомпьютеры в универсальные виртуальные чашки Петри, где можно тестировать генетические мутации и лекарственные препараты без проведения сотен долгих лабораторных экспериментов.